薬学部や理工学部の生化学講義で、多くの学生が最初の関門として直面するのが「ミカエリス・メンテン式」です。無数のアルファベットと複雑な分数式が並ぶテキストを開き、思わず苦手意識を抱いてしまった経験を持つ方も少なくないはずです。
しかし、数式の背後にある反応モデルの物理的な意味を順序立てて捉えれば、この式は驚くほど合理的で美しい論理の積み重ねであることが見えてきます。2026年の現在でも、創薬ターゲットの探索からバイオインフォマティクス解析に至るまで第一線で使われ続けるこの基本式について、本質の理解から試験対策までを一気に整理していきましょう。
📌 【この記事の重要ポイントまとめ】
- 要点1:ミカエリス・メンテン式は、基質濃度と酵素反応速度の関係を定式化した酵素反応速度論の基本方程式。
- 要点2:定常状態近似法により複合体濃度を一定と置くことで、実験室で直接測定可能な変数のみで速度を記述できる。
- 要点3:ラインウィーバー・バークプロット等の作図法や阻害様式の違いを押さえることで、薬剤師国家試験や研究の現場で即戦力の知識となる。
【なぜ難解なのか】酵素反応速度論の基本とミカエリス・メンテン式の役割
生化学を学ぶ現場において、ミカエリス・メンテン式が難解と感じられる最大の要因は、「目に見えない酵素と基質の結合プロセス」を一気に1つの数式に凝縮している点にあります。数式だけを暗記しようとすると記号の羅列に見えますが、基礎となる現象は極めてシンプルです。
酵素($E$)は基質($S$)と一時的に結合して酵素・基質複合体($ES$)を形成し、そこから生成物($P$)を放出して元のフリーな酵素に戻ります。この一連の流れを速度論的に定式化したものが酵素反応速度論の中核をなすミカエリス・メンテン式です。
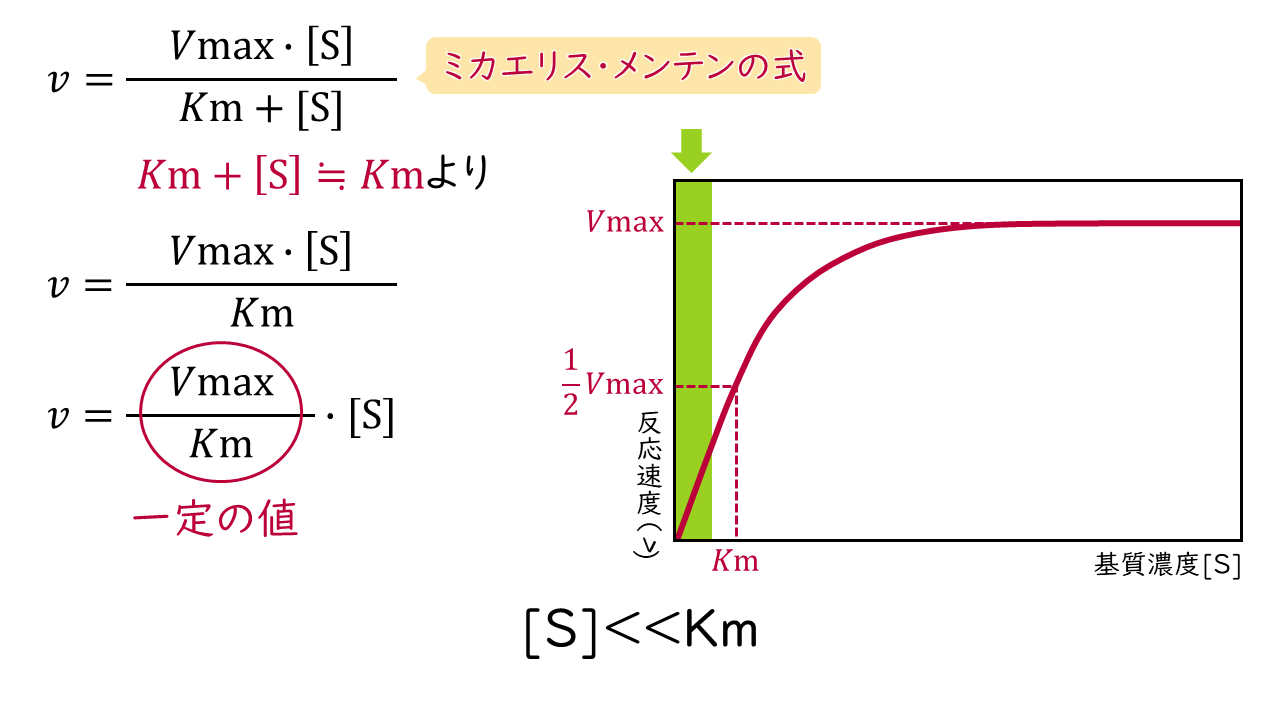
基質濃度 $[S]$ が極めて薄いときは、基質が増えるほど反応速度 $v$ も比例して速くなります。一方で基質濃度を極限まで高めていくと、すべての酵素分子がフル稼働する状態(飽和状態)に達し、反応速度は頭打ちになります。この「最初は急勾配で、次第に頭打ちになる双曲線」を数学的に表現したのが以下の基本式です。
$$v = \frac{V_{\max}[S]}{K_m + [S]}$$
【本質を紐解く】ミカエリス定数Kmと最大反応速度Vmaxの真の意味
式を自在に扱うためには、2大パラメータである最大反応速度 $V_{\max}$ と ミカエリス定数 $K_m$ の物理的意味を直感的に把握しておく必要があります。
まず $V_{\max}$ は、系内に存在するすべての酵素が $ES$ 複合体を形成したときの限界速度を指します。どれほど基質濃度を高めても、これ以上の速度は出ないという天井の値です。
次に $K_m$ は、反応速度が最大反応速度の半分($v = \frac{1}{2}V_{\max}$)に達するときの基質濃度 $[S]$ を意味します。この定義から、以下の重要な性質が導かれます。
・$K_m$ が小さい酵素:わずかな基質濃度でも $1/2 V_{\max}$ に到達できるため、「基質との親和性が高い」ことを意味します。
・$K_m$ が大きい酵素:十分な速度を出すために大量の基質を必要とするため、「基質との親和性が低い」ことを示します。
単位として $[S]$ と同じモル濃度($\text{mol/L}$)を持つ点も、基礎を押さえる上で見落とせないポイントです。
【導出の核心】定常状態近似法と平衡近似の違いを押さえる
導出の過程は、生化学の論述問題や薬学系試験でも頻出のテーマです。導出アプローチには主に平衡近似法(ミカエリスとメンテンの原法)と、ブリッグスとホールデンが提唱した定常状態近似法の2通りが存在します。
現代の標準理論である定常状態近似法では、以下の反応スキームを前提とします。
$$E + S \underset{k_{-1}}{\overset{k_1}{\rightleftharpoons}} ES \xrightarrow{k_2} E + P$$
各ステップの速度定数を $k_1$(複合体生成)、$k_{-1}$(複合体解離)、$k_2$(生成物生成)と置きます。反応開始直後のごく短い時間を除き、中間体である $ES$ 複合体の生成速度と分解速度がつり合って濃度変化がほぼゼロになる状態、すなわち「定常状態」が成立すると仮定します。
$$\frac{d[ES]}{dt} = k_1 [E][S] - (k_{-1} + k_2)[ES] = 0$$
全酵素濃度 $[E_t] = [E] + [ES]$ を用いてフリーの $[E]$ を消去し整理すると、$K_m$ は次のように速度定数の比として厳密に定義されます。
$$K_m = \frac{k_{-1} + k_2}{k_1}$$
一方、平衡近似法は $k_2 \ll k_{-1}$ を仮定し、$ES \rightarrow E + P$ の進行が極めて遅く、$E + S \rightleftharpoons ES$ が常に解離平衡にあると見なす手法($K_s = k_{-1}/k_1$)です。定常状態近似法はより汎用性が高く、平衡が成り立たない系でも適用できる優れた導出法です。
【グラフ化の技術】ラインウィーバー・バークプロットとエディ・ホフステープロット
ミカエリス・メンテンの双曲線グラフから目視で正確な $V_{\max}$ や $K_m$ を読み取るのは困難です。そこで、データを直線関係に変換する作図法が考案されました。
代表格が、式の両辺の逆数を取るラインウィーバー・バークプロット(二重逆数プロット)です。
$$\frac{1}{v} = \frac{K_m}{V_{\max}} \cdot \frac{1}{[S]} + \frac{1}{V_{\max}}$$
横軸に $1/[S]$、縦軸に $1/v$ をプロットすると直線が得られ、グラフの切片から重要な数値を即座に算出できます。
・$y$ 切片: $\frac{1}{V_{\max}}$(逆数を取れば $V_{\max}$ が求まる)
・$x$ 切片: $-\frac{1}{K_m}$(符号を反転して逆数を取れば $K_m$ が求まる)
・直線の傾き: $\frac{K_m}{V_{\max}}$
低基質濃度域の実験誤差が拡大しやすいラインウィーバー・バークプロットの欠点を補う手法として、エディ・ホフステープロット(縦軸 $v$、横軸 $v/[S]$、式:$v = -K_m \frac{v}{[S]} + V_{\max}$)も広く活用されています。
【阻害様式の見極め】拮抗阻害と非拮抗阻害のグラフ変化と特徴
創薬や薬理学において最も実用的な応用が、酵素阻害剤のメカニズム解析です。ラインウィーバー・バークプロットにおける直線の動きを把握することで、阻害様式を一目で判別できます。
1. 拮抗阻害(競合阻害):
阻害剤が基質と構造的に類似しており、酵素の活性部位を奪い合います。基質濃度を極限まで増やせば阻害剤を追い出せるため、$V_{\max}$ は変化せず、$K_m$ が見かけ上増大します。グラフ上では「$y$ 切片が一定のまま傾きが急になる($x$ 切片が原点に近づく)」挙動を示します。
2. 非拮抗阻害(非競合阻害):
阻害剤が活性部位以外の場所(アロステリック部位など)に結合し、酵素の働き自体を低下させます。基質をどれだけ増やしても阻害は解除されないため、$K_m$ は変化せず、$V_{\max}$ が低下します。グラフ上では「$x$ 切片が一定のまま $y$ 切片が上方にシフトする」動きを見せます。
3. 不拮抗阻害:
阻害剤が $ES$ 複合体にのみ結合するタイプで、$V_{\max}$ も $K_m$ も等しい割合で低下し、プロットの直線が平行移動します。
【発展と試験対策】アロステリック酵素のヒルプロットと薬剤師国家試験の攻略法
すべての酵素がミカエリス・メンテン式に従うわけではありません。ヘモグロビンや一部の代謝調節酵素のように複数のサブユニットを持つアロステリック酵素は、基質が1つ結合すると他の部位の親和性が変化する「協同性」を示します。
反応曲線は双曲線ではなくS字状(シグモイド曲線)となり、この協同性の強さを定量化するためにヒルプロット(Hill plot)が用いられます。ヒルの係数 $n_H > 1$ であれば正の協同性、$n_H = 1$ であれば協同性のない通常のミカエリス・メンテン型反応を示します。
薬剤師国家試験の生化学領域における計算問題では、以下の実践的解法パターンを頭に入れておくと計算時間を劇的に短縮できます。
・「$[S] = K_m$ のとき $v = 0.5 V_{\max}$」という基本関係式
・「$[S] = 2K_m$ のとき $v = \frac{2}{3} V_{\max} \fallingdotseq 0.67 V_{\max}$」
・「$[S] = 9K_m$ のとき $v = 0.9 V_{\max}$」
これらの比率関係をあらかじめ覚えておくことで、検算スピードが飛躍的に向上します。
【ミカエリス・メンテン式】に関するよくある質問(FAQ)
Q1:ミカエリス定数Kmの単位は何ですか?
A1:基質濃度 $[S]$ と同じモル濃度($\text{mol/L}$、$\text{mM}$、$\mu\text{M}$ など)です。速度の単位ではなく濃度の単位である点に注意してください。
Q2:平衡近似法と定常状態近似法はどちらを覚えるべきですか?
A2:現在の薬学・生化学の標準カリキュラムでは定常状態近似法が主流です。試験やレポート対策としても、複合体濃度の時間変化をゼロと置く定常状態近似法のステップを優先してマスターすることをおすすめします。
Q3:なぜ生体内の酵素反応はアロステリック制御を受けるものが多いのですか?
A3:シグモイド曲線を描くアロステリック酵素は、基質濃度のわずかな変化に対して反応速度をスイッチのように急激にオン・オフできるため、生体内の代謝バランスを精密にフィードバック制御するのに極めて適しているからです。
まとめ:理論の全体像を掴んで生化学の得点源へ
ミカエリス・メンテン式は、一見すると無機質な数式に見えますが、本質は「酵素と基質が出会い、結合し、生成物を生み出す」というミクロな生命現象を鮮やかに数式化した道具に過ぎません。
$K_m$ と $V_{\max}$ の概念を押さえ、定常状態近似のロジックと二重逆数プロットによるグラフ解析を結びつけることで、生化学や薬理学の学習効率は劇的に高まります。基礎理論を確実に定着させ、定期試験や国家試験対策、さらには専門研究の強力な武器として活用していきましょう。 (出典: ミカエリス メンテン 式(Yahoo!ニュース))